

Подтема 1
Гематоэнцефалический барьер (ГЭБ) представляет собой высокоспециализированную и строго регулируемую границу между кровеносной системой и центральной нервной системой (ЦНС), играющую критическую роль в поддержании гомеостаза мозга. Эта сложная структура обеспечивает селективный транспорт необходимых питательных веществ, регулирует ионный баланс, предотвращает проникновение потенциально вредных веществ, патогенов и циркулирующих иммунных клеток, а также защищает мозг от колебаний состава крови. Морфофункциональная организация ГЭБ не сводится к простому физическому барьеру; это динамическая система, активно участвующая в регуляции мозговой функции, нейроваскулярной связи и иммунном привилегии ЦНС. Понимание этой организации имеет фундаментальное значение для нейронаук, фармакологии и разработки терапевтических стратегий для широкого спектра неврологических заболеваний.
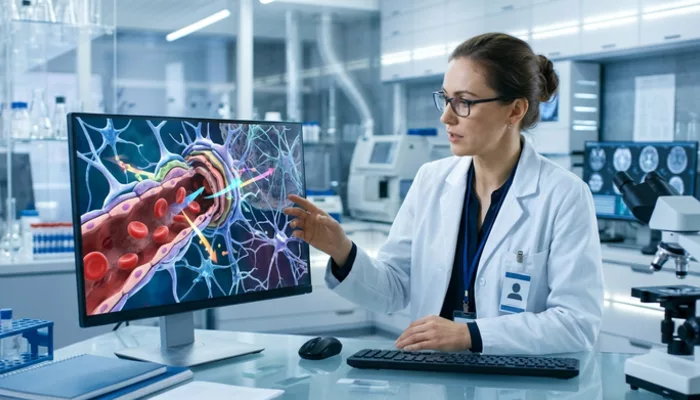
Морфологическая основа гематоэнцефалического барьера формируется комплексом клеточных и внеклеточных элементов, которые в совокупности образуют так называемую нейроваскулярную единицу (НВЕ). Центральным компонентом ГЭБ являются специализированные эндотелиальные клетки капилляров головного мозга. В отличие от эндотелия других органов, церебральные эндотелиальные клетки характеризуются отсутствием фенестраций (пор) и крайне низким уровнем пиноцитозной активности, что минимизирует неспецифический везикулярный транспорт веществ через клеточную стенку. Эти клетки образуют непрерывный, плотно упакованный монослой, который представляет собой первый и наиболее строгий физический барьер.
Ключевой особенностью эндотелиальных клеток ГЭБ является наличие высокоразвитых тугих контактов (tight junctions), которые формируют непрерывную сеть межклеточных соединений. Эти контакты представляют собой специализированные белковые комплексы, состоящие из трансмембранных белков, таких как окклюдин, клаудины (в частности, клаудин-5, который является основным белком тугих контактов ГЭБ) и белки адгезии соединений (JAMs). Изнутри клетки эти трансмембранные белки взаимодействуют с цитоплазматическими белками-адаптерами, такими как белки зоны окклюденс (ZO-1, ZO-2, ZO-3), которые, в свою очередь, связываются с актиновым цитоскелетом. Такая сложная организация тугих контактов эффективно герметизирует межклеточное пространство, предотвращая парацеллюлярную диффузию водорастворимых молекул и ионов, тем самым обеспечивая высокую избирательность проницаемости ГЭБ.
Вокруг эндотелиальных клеток расположена базальная мембрана – тонкий, но прочный внеклеточный матрикс, состоящий из коллагена IV типа, ламинина, фибронектина и гепарансульфатпротеогликанов. Базальная мембрана является не только структурной опорой, но и играет роль в клеточной адгезии, миграции и передаче сигналов, а также служит своего рода фильтром для некоторых макромолекул.
Внутри базальной мембраны, тесно ассоциированные с эндотелием, находятся перициты. Эти мезенхимальные клетки обволакивают капилляры, образуя частичное покрытие. Перициты участвуют в индукции и поддержании барьерных свойств эндотелия, регулируют ангиогенез, модулируют проницаемость ГЭБ, участвуют в иммунном ответе и фагоцитозе. Они взаимодействуют с эндотелиальными клетками через прямые контакты и паракринные сигналы, влияя на экспрессию белков тугих контактов и активность транспортеров. Потеря перицитов или их дисфункция приводит к нарушению целостности ГЭБ и развитию патологических состояний.
Внешний слой нейроваскулярной единицы формируют конечные ножки астроцитов. Эти глиальные клетки, отростки которых плотно обволакивают кровеносные капилляры, играют критическую роль в индукции и поддержании барьерных свойств эндотелия. Астроциты секретируют различные факторы, такие как глиальный нейротрофический фактор (GDNF), ангиопоэтин-1 и трансформирующий ростовой фактор-бета (TGF-β), которые способствуют формированию и стабилизации тугих контактов в эндотелии. Помимо этого, астроциты участвуют в регуляции мозгового кровотока, ионного гомеостаза, метаболической поддержке нейронов и обмене нейротрансмиттеров.
Таким образом, морфофункциональная организация ГЭБ представляет собой сложную многоклеточную структуру, где эндотелиальные клетки, перициты, базальная мембрана и астроциты взаимодействуют синергетически. Эта нейроваскулярная единица функционирует как интегрированная, динамически регулируемая система, обеспечивающая строгий контроль над обменом веществ между кровью и мозгом, что крайне важно для поддержания уникальной среды ЦНС.
Функциональная уникальность гематоэнцефалического барьера (ГЭБ) определяется не только его морфологической структурой, но и сложной системой активных и пассивных механизмов транспорта, которые обеспечивают строгую селективность и динамическую регуляцию обмена веществ между кровью и мозгом. Эти механизмы позволяют мозгу получать необходимые питательные вещества, поддерживать стабильный ионный состав и эффективно удалять продукты метаболизма, одновременно защищая его от токсинов и патогенов.
Основы морфологической организации и компартментализации гематоэнцефалического барьера
Одним из ключевых функциональных аспектов ГЭБ является его селективная проницаемость. Тугие контакты между эндотелиальными клетками практически полностью блокируют парацеллюлярную диффузию гидрофильных молекул, ограничивая их доступ в мозг. В то же время, липофильные молекулы, благодаря своей способности растворяться в липидных мембранах, могут относительно свободно проникать через эндотелиальные клетки путем трансцеллюлярной диффузии. Однако даже для липофильных соединений их проницаемость через ГЭБ может быть ограничена активными эффлюксными насосами.
Активный транспорт через ГЭБ осуществляется с помощью специализированных белковых транспортеров, расположенных на апикальной (люминальной) и базолатеральной (абалюминальной) мембранах эндотелиальных клеток. Эти транспортеры делятся на две основные категории: транспортеры притока (influx transporters), которые доставляют необходимые вещества в мозг, и эффлюксные насосы (efflux pumps), которые активно выводят вещества из мозга.
Среди транспортеров притока наиболее важным является GLUT1 (глюкозный транспортер 1), который обеспечивает высокоэффективный транспорт глюкозы – основного энергетического субстрата для мозга. Мозг потребляет около 20% всей глюкозы организма, и GLUT1 является критическим для поддержания его метаболических потребностей. Другие важные транспортеры включают LAT1 (транспортер крупных нейтральных аминокислот), который переносит незаменимые аминокислоты, необходимые для синтеза белка и нейротрансмиттеров, а также CAT1 (транспортер катионных аминокислот) и трансферриновый рецептор, ответственный за транспорт железа.
Эффлюксные насосы представляют собой мощную защитную систему, активно выводящую из мозга ксенобиотики, метаболиты, токсины и многие лекарственные препараты. Наиболее изученными представителями этой группы являются P-гликопротеин (P-gp, также известный как MDR1 или ABCB1), белок резистентности рака молочной железы (BCRP, ABCG2) и белки, ассоциированные с множественной лекарственной устойчивостью (MRPs, семейство ABCC). Эти белки принадлежат к суперсемейству АТФ-связывающих кассетных (ABC) транспортеров и используют энергию гидролиза АТФ для выведения широкого спектра субстратов обратно в кровоток. Активность этих эффлюксных насосов является основной причиной того, что большинство лекарственных средств не могут эффективно достичь терапевтических концентраций в ЦНС, создавая серьезные проблемы для лечения неврологических и психиатрических заболеваний.
Помимо физического и транспортного барьеров, ГЭБ также функционирует как метаболический барьер. Эндотелиальные клетки ГЭБ и окружающие их астроциты содержат различные ферменты, способные метаболизировать или инактивировать некоторые нейротрансмиттеры, гормоны и ксенобиотики до их проникновения в паренхиму мозга. Примерами таких ферментов являются моноаминоксидаза (МАО), бутирилхолинэстераза и некоторые изоформы цитохрома P450.
ГЭБ также играет критическую роль в поддержании ионного гомеостаза и осмотического давления в ЦНС. Он активно регулирует концентрации ионов, таких как Na+, K+ и Cl-, предотвращая нежелательные изменения, которые могли бы нарушить электрическую активность нейронов и привести к отеку мозга. Эта функция обеспечивается специфическими ионными каналами и насосами, расположенными на мембранах эндотелиальных клеток.
Наконец, нейроваскулярная единица в целом участвует в нейроваскулярной связи, координируя локальный мозговой кровоток с метаболическими потребностями нейронов. Астроциты, перициты и эндотелиальные клетки взаимодействуют, чтобы модулировать диаметр сосудов и, следовательно, кровоснабжение конкретных областей мозга в ответ на их активность. Таким образом, функциональная организация ГЭБ выходит за рамки простого барьера, представляя собой сложную и динамическую систему, активно поддерживающую уникальную и стабильную среду, необходимую для оптимального функционирования центральной нервной системы.
Гематоэнцефалический барьер (ГЭБ) не является статичной структурой; это динамическая и активно регулируемая система, способная изменять свою проницаемость в ответ на различные физиологические и патологические стимулы. Эта динамика обеспечивается сложным взаимодействием всех компонентов нейроваскулярной единицы и их реакцией на сигналы из микроокружения. Понимание механизмов регуляции и дисфункции ГЭБ имеет решающее значение для разработки эффективных методов лечения неврологических расстройств.
Регуляция целостности ГЭБ начинается на стадии эмбрионального развития, когда астроциты и перициты индуцируют формирование барьерных свойств в эндотелиальных клетках. Астроциты секретируют ряд факторов, таких как глиальный нейротрофический фактор (GDNF), ангиопоэтин-1 и трансформирующий ростовой фактор-бета (TGF-β), которые способствуют созреванию и поддержанию тугих контактов, а также экспрессии специфических транспортеров. Перициты, в свою очередь, стабилизируют эндотелиальный монослой, регулируют кровоток и активно участвуют в модуляции проницаемости ГЭБ, воздействуя на экспрессию и локализацию белков тугих контактов.
Функциональные механизмы и транспортные системы гематоэнцефалического барьера
Нарушение целостности ГЭБ может быть вызвано различными факторами, включая воспаление, оксидативный стресс, гипоксию, ишемию и действие некоторых цитокинов. Провоспалительные цитокины, такие как фактор некроза опухолей-альфа (TNF-α) и интерлейкин-1 бета (IL-1β), могут приводить к перераспределению и деградации белков тугих контактов, повышая проницаемость ГЭБ. Матриксные металлопротеиназы (ММР), особенно ММР-2 и ММР-9, активируются при различных патологиях и способны разрушать компоненты внеклеточного матрикса и белки тугих контактов, что также приводит к нарушению барьерной функции.
Дисфункция ГЭБ является ключевым патогенетическим фактором во множестве неврологических заболеваний. При нейродегенеративных заболеваниях, таких как болезнь Альцгеймера, болезнь Паркинсона и рассеянный склероз, наблюдается нарушение целостности ГЭБ, что может приводить к проникновению в мозг токсичных веществ, иммунных клеток и воспалительных медиаторов. При болезни Альцгеймера, например, нарушение функции ГЭБ может способствовать накоплению амилоида-бета в мозге, а также препятствовать его эффективному выведению. При рассеянном склерозе прорыв ГЭБ является одним из ранних событий, позволяющих аутореактивным Т-лимфоцитам проникать в ЦНС и вызывать демиелинизацию.
В условиях острого инсульта (ишемического или геморрагического) происходит раннее и значительное нарушение ГЭБ, что приводит к развитию вазогенного отека мозга, extravasation крови и проникновению воспалительных клеток, усугубляя повреждение тканей. При опухолях мозга, таких как глиобластома, кровеносные сосуды часто имеют аномальную структуру и «протекающий» ГЭБ, однако проницаемость таких сосудов непредсказуема и неравномерна, что создает серьезные препятствия для эффективной доставки химиотерапевтических препаратов.
Инфекции центральной нервной системы, такие как менингит и энцефалит, часто связаны с нарушением ГЭБ, что позволяет патогенам (бактериям, вирусам) и их токсинам проникать в мозг. Также дисфункция ГЭБ наблюдается при эпилепсии, черепно-мозговых травмах и некоторых метаболических энцефалопатиях.
Клиническое значение морфофункциональной организации ГЭБ проявляется, в частности, в проблеме доставки лекарственных средств в ЦНС. Примерно 98% низкомолекулярных препаратов и практически 100% крупномолекулярных не способны эффективно преодолевать ГЭБ и достигать терапевтических концентраций в мозге. Это является огромным вызовом для лечения нейрологических и психиатрических расстройств.
Для преодоления ГЭБ разрабатываются различные терапевтические стратегии. Они включают химическую модификацию лекарств для повышения их липофильности или придания им свойств пролекарств, которые могут быть метаболизированы в активную форму уже в мозге. Другой подход заключается в использовании существующих транспортных систем ГЭБ: лекарства могут быть конъюгированы с лигандами для рецепторов, экспрессируемых на эндотелиальных клетках (например, трансферриновый рецептор), чтобы использовать их как «троянских коней» для трансцеллюлярного транспорта. Активно исследуются нанотехнологии, включающие инкапсуляцию лекарств в наночастицы или липосомы, способные проникать через ГЭБ.
Также разрабатываются методы временного и локального открытия ГЭБ, такие как осмотический шок (введение гиперосмотических растворов), использование сфокусированного ультразвука в сочетании с микропузырьками, агонистов брадикининовых рецепторов, которые временно увеличивают проницаемость барьера. В некоторых случаях применяется интратекальное введение препаратов непосредственно в спинномозговую жидкость, минуя ГЭБ.
В конечном итоге, глубокое понимание морфофункциональной организации ГЭБ не только раскрывает фундаментальные механизмы защиты мозга, но и открывает новые пути для разработки инновационных диагностических и терапевтических подходов. ГЭБ становится не просто препятствием, а потенциальной терапевтической мишенью, которую можно модулировать для восстановления его целостности при патологиях или временно использовать для целенаправленной доставки лекарств в ЦНС.
Данная статья носит информационный характер.