

Фундаментальная роль астроцитов в поддержании нейрометаболического гомеостаза ЦНС
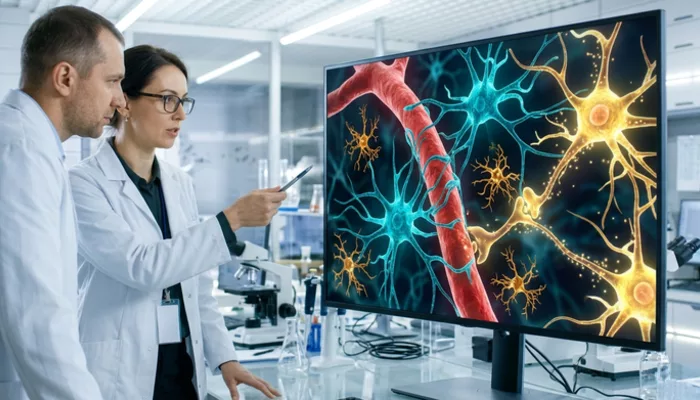
Глиальные клетки, долгое время недооцениваемые и рассматриваемые лишь как «клей» для нейронов, сегодня признаны активными и незаменимыми участниками всех аспектов функционирования центральной нервной системы (ЦНС). Их роль выходит далеко за рамки структурной поддержки, охватывая регуляцию нейронной активности, поддержание гомеостаза, иммунный надзор и, что особенно важно, глубокое влияние на нейрометаболизм. Среди глиальных клеток астроциты выделяются своим исключительным вкладом в энергетическое обеспечение мозга и поддержание его метаболической стабильности. Эти звездчатые клетки формируют обширные сети, пронизывающие всю паренхиму мозга, и находятся в тесном контакте как с нейронами, так и с кровеносными сосудами, что позволяет им выступать в качестве ключевых посредников между метаболическими потребностями нейронов и доступными ресурсами.
Одной из фундаментальных функций астроцитов является участие в формировании и функционировании так называемого «трипартитного синапса», где они не просто пассивно окружают пре- и постсинаптические терминалы, но и активно модулируют синаптическую передачу. Астроциты экспрессируют широкий спектр транспортеров нейротрансмиттеров, в частности, высокоэффективные транспортеры глутамата (EAAT1/GLAST и EAAT2/GLT-1). Поглощение избыточного глутамата из синаптической щели критически важно для предотвращения эксайтотоксичности и поддержания нормальной нейронной возбудимости. После поглощения глутамат метаболизируется в глутамин с помощью фермента глутаминсинтетазы, а затем возвращается к нейронам для повторного синтеза глутамата или ГАМК, замыкая таким образом глутамат-глутаминовый цикл. Этот процесс требует значительных энергетических затрат, подчеркивая метаболическую активность астроцитов.
Помимо регуляции нейротрансмиттеров, астроциты играют центральную роль в поддержании ионного гомеостаза, особенно в буферизации внеклеточного калия (K+). Активная нейронная деятельность приводит к высвобождению K+ во внеклеточное пространство, и астроциты, благодаря своей обширной сети и экспрессии K+-каналов и Na+/K+-АТФазы, эффективно поглощают этот избыточный калий, предотвращая опасные изменения возбудимости нейронов. Эта функция также является энергозависимой и демонстрирует прямую связь астроцитов с энергетическим метаболизмом.
Ключевая роль астроцитов в нейрометаболизме проявляется также в их способности к хранению гликогена – единственного значимого энергетического резерва в мозге. Хотя запасы гликогена в астроцитах ограничены, они могут быть быстро мобилизованы для производства лактата, который затем транспортируется к нейронам и служит предпочтительным субстратом для окислительного фосфорилирования в условиях повышенной нейронной активности. Эта концепция известна как «астроцитарно-нейронный лактатный шаттл» и является краеугольным камнем современного понимания энергетического обеспечения мозга. Кроме того, астроциты участвуют в синтезе холестерина, липидов и других необходимых для нейронов молекул, а также в детоксикации аммиака и других метаболических отходов. Их тесный контакт с эндотелиальными клетками гематоэнцефалического барьера (ГЭБ) и экспрессия аквапорина-4 (AQP4) на их концевых ножках также подчеркивают их критическую функцию в поддержании целостности ГЭБ и регуляции водного баланса мозга, что имеет прямое отношение к метаболическому здоровью ЦНС. Астроциты также играют важную роль в антиоксидантной защите, синтезируя и высвобождая глутатион – мощный антиоксидант, защищающий нейроны от окислительного стресса, который часто возникает при различных патологических состояниях и оказывает существенное влияние на нейрометаболизм. Таким образом, астроциты являются многофункциональными клетками, чья деятельность определяет энергетический статус и метаболическую устойчивость всей нейронной сети.
Микроглия представляет собой уникальную популяцию резидентных иммунных клеток центральной нервной системы, составляющих около 5-10% всех глиальных клеток. В отличие от астроцитов, имеющих нейроэктодермальное происхождение, микроглия развивается из миелоидного ростка и мигрирует в мозг на ранних стадиях эмбрионального развития, выполняя роль основной линии защиты и иммунного надзора. В здоровом мозге микроглиальные клетки находятся в так называемом «покоящемся» или «сканирующем» состоянии, характеризующемся многочисленными тонкими отростками, которые постоянно исследуют микроокружение, мониторя изменения гомеостаза. Это динамичное поведение позволяет им быстро реагировать на любые нарушения, будь то инфекции, травмы, ишемия или накопление аномальных белков.
Микроглия: иммунные стражи мозга и их динамическое участие в нейрометаболизме
Функциональность микроглии тесно связана с ее способностью к динамической активации и изменению фенотипа. При обнаружении угрозы микроглия быстро трансформируется, изменяя свою морфологию (становится амебоидной), мигрируя к месту повреждения и приобретая фагоцитарные свойства. Она активно поглощает клеточный дебрис, апоптотические клетки, поврежденные синапсы и патологические агрегаты белков, такие как амилоидные бляшки при болезни Альцгеймера, тем самым способствуя очищению мозга и поддержанию его функциональной целостности. Этот процесс фагоцитоза является энергетически затратным и требует значительной перестройки метаболизма микроглиальной клетки, включая усиление поглощения глюкозы и ее метаболизма.
Однако роль микроглии не ограничивается лишь функцией «уборщиков» или «полицейских» мозга. Она активно участвует в регуляции синаптической пластичности и ремоделировании нейронных сетей как в процессе развития, так и во взрослом мозге. Путем выборочного фагоцитоза слабых или избыточных синапсов микроглия способствует оптимизации коннективности и формированию эффективных нейронных цепей. Этот процесс имеет прямые метаболические последствия, поскольку эффективно функционирующие синапсы требуют меньше энергии для поддержания своей активности. В свою очередь, дисфункция микроглии в этом аспекте может приводить к нарушению синаптической организации и когнитивным дефицитам, что также отражается на общем нейрометаболизме.
Нейрометаболизм тесно переплетается с иммунными функциями микроглии. Активированная микроглия претерпевает значительные метаболические сдвиги, переключаясь, например, на усиленный гликолиз (эффект Варбурга), чтобы быстро генерировать АТФ, необходимый для фагоцитоза, миграции и секреции провоспалительных медиаторов. Эти медиаторы, такие как цитокины (TNF-α, IL-1β, IL-6) и хемокины, хоть и необходимы для устранения угрозы, в условиях хронического нейровоспаления могут оказывать токсическое воздействие на нейроны и астроциты, нарушая их метаболизм и способствуя развитию нейродегенеративных процессов. С другой стороны, микроглия также способна принимать противовоспалительный фенотип (часто ассоциируемый с метаболизмом окислительного фосфорилирования), который способствует разрешению воспаления, репарации тканей и нейропротекции, например, путем секреции нейротрофических факторов и иммуномодулирующих цитокинов. Таким образом, баланс между различными фенотипами микроглии и их метаболические профили являются критически важными для поддержания здорового нейрометаболизма и предотвращения патологий ЦНС. Дисрегуляция метаболизма микроглии, приводящая к хронической активации и дисбалансу провоспалительных/противовоспалительных факторов, является ключевым фактором в патогенезе многих нейродегенеративных заболеваний.
Взаимодействие астроцитов и микроглии представляет собой сложную и динамическую сеть коммуникаций, которая имеет фундаментальное значение для поддержания здоровья и метаболической стабильности центральной нервной системы. Эти две основные популяции глиальных клеток не действуют изолированно; их функции тесно переплетаются, формируя синергетическую систему, которая реагирует на изменения в микроокружении, регулирует нейронную активность и модулирует нейрометаболизм. Понимание этого взаимодействия критически важно для разработки стратегий лечения нейровоспалительных и нейродегенеративных заболеваний.
Астроциты активно модулируют состояние и функцию микроглии. В условиях гомеостаза астроциты выделяют ряд молекул, таких как CX3CL1 (фракталкин), TGF-β и простагландины, которые способствуют поддержанию микроглии в ее покоящемся, сканирующем состоянии, предотвращая избыточную активацию. Однако при повреждении или патологии астроциты могут выделять так называемые «факторы повреждения» (DAMPs – damage-associated molecular patterns), например, АТФ, высокомобильный белок группы B1 (HMGB1), а также провоспалительные цитокины и хемокины, которые служат мощными сигналами для активации микроглии. Эта астроцитарно-индуцированная активация микроглии может быть как нейропротекторной (например, способствуя фагоцитозу дебриса и разрешению воспаления), так и нейротоксической (приводя к чрезмерному воспалению и повреждению нейронов), в зависимости от контекста и длительности воздействия. Метаболические сдвиги в астроцитах, вызванные стрессом, также могут влиять на метаболизм микроглии, направляя ее к определенным функциональным фенотипам.
Синергия и дисфункция: взаимодействие астроцитов и микроглии в контексте нейрометаболизма
С другой стороны, микроглия также оказывает существенное влияние на астроциты, вызывая их реактивность, известную как реактивный астроглиоз. Активированная микроглия секретирует цитокины, такие как IL-1α, TNF-α и C1q, которые синергично индуцируют у астроцитов фенотип A1 – так называемые «токсичные» астроциты. Эти A1-астроциты теряют свои нормальные нейропротекторные функции, такие как поддержание синаптической функции и метаболическая поддержка нейронов, и приобретают способность высвобождать токсичные факторы, способствующие гибели нейронов и олигодендроцитов. В то же время, существуют и «A2» фенотипы астроцитов, которые могут быть индуцированы микроглией и обладают нейропротекторными свойствами, способствуя росту и выживанию нейронов, а также восстановлению ГЭБ. Баланс между этими астроцитарными фенотипами, который во многом определяется микроглиальной активностью, является ключевым для исхода различных патологических состояний и поддержания нейрометаболического равновесия.
В контексте нейрометаболизма, взаимодействие астроцитов и микроглии имеет прямые и глубокие последствия. Например, при ишемии или нейровоспалении, активированная микроглия и реактивные астроциты могут конкурировать с нейронами за энергетические субстраты, такие как глюкоза, что усугубляет энергетический дефицит в уязвимых нейронных популяциях. Астроциты, выделяя лактат, могут поддерживать метаболизм микроглии, особенно при ее переходе на гликолитический метаболизм во время активации, обеспечивая быстрый источник энергии для иммунного ответа. В свою очередь, продукты метаболизма микроглии, такие как реактивные формы кислорода (АФК) и азота (АФА), могут вызывать окислительный стресс в астроцитах, нарушая их способность к поддержанию гомеостаза и энергетическому обеспечению нейронов. Дисрегуляция этого взаимодействия лежит в основе прогрессирования многих нейродегенеративных заболеваний, таких как болезни Альцгеймера и Паркинсона, где хроническое нейровоспаление, опосредованное активностью микроглии и астроцитов, приводит к нарушению нейрометаболизма, синаптической дисфункции и гибели нейронов. Понимание молекулярных механизмов, лежащих в основе этого сложного танца между астроцитами и микроглией, открывает новые терапевтические пути для защиты нейрометаболизма, модуляции нейровоспаления и замедления прогрессирования заболеваний ЦНС, направленные на восстановление здорового глиального взаимодействия.
Данная статья носит информационный характер.